
نموذج المباراة الوطنية المشتركة CNC 2010: علم الأحياء - شعبة BCPST لولوج مدارس المهندسين
باختصار
هذا نموذج امتحان كتابي سابق لمباراة مباراة ولوج المدارس العليا للمهندسين لدى المباراة الوطنية المشتركة CNC (الأقسام التحضيرية) (session 2010)، منشور على وظيفة إنفو للاطلاع والتحميل المجاني بصيغة PDF مع تصحيح مقترح.
- الجهة المنظمة
- المباراة الوطنية المشتركة CNC (الأقسام التحضيرية)
- الدرجة
- مباراة ولوج المدارس العليا للمهندسين
- التخصص
- علم الأحياء
- الدورة
- session 2010
- عدد الصفحات
- 10
- لغة الأسئلة
- الفرنسية
- التصحيح
- تصحيح مقترح متوفر في هذه الصفحة
📝 نص أسئلة النموذج (مستخرج آلياً من الصفحات الممسوحة)
استُخرج هذا النص آلياً من صور الامتحان وقد يحتوي على أخطاء في القراءة — الصور أعلاه هي المرجع.
Royaume du Maroc
Ministère de l’Education Nationale
de l’Enseignement Supérieur, de la Formation des Cadres
et de la Recherche Scientifique
Présidence du Concours National Commun
Ecole Supérieure des Industries du Textile et de l'Habillement (ESITH)
Concours national commun d’Admission
aux grandes Ecoles d’Ingénieurs ou Assimilées
Session 2010
EPREUVE DE BIOLOGIE
FILIERE BCPST
Détection d’une erreur éventuelle par le candidat
Dans le cas où un(e) candidat(e) repère ce qui lui semble être une erreur d’énoncé, il (elle) le signale
très lisiblement dans sa copie, propose la correction et poursuit l'épreuve en conséquence.
Durée de l’épreuve : 04 heures
wadifa-info.com نماذج المباريات من موقع وظيفة إنفو
CNC 2010 Epreuve de Biologie
SUJET ١: SYNTHESE SUR DOCUMENTS
Contraction musculaire et adaptation physiologique à l’effort physique
Vous traitez le sujet en vous appuyant sur l'exploitation des documents fournis, dûment analysés
et interprétés, ainsi que vos connaissances.
Page : 2/10
wadifa-info.com نماذج المباريات من موقع وظيفة إنفو
CNC 2010 Epreuve de Biologie
1/ PHENOMENES MECANIQUES DE LA CONTRACTION DU MUSCLE SQUELETTIQUE
TRS EE Es
CT k ae FE à حا Ne pe 4 : i نا كدق 07 DE Pie Saut" À
D الا جات | - 8
RP >, SE + Run 4
DRE RE : Le me em م
: = il OÙ pt en حل a sr 7°
SRE 7 حم = TE RE ns
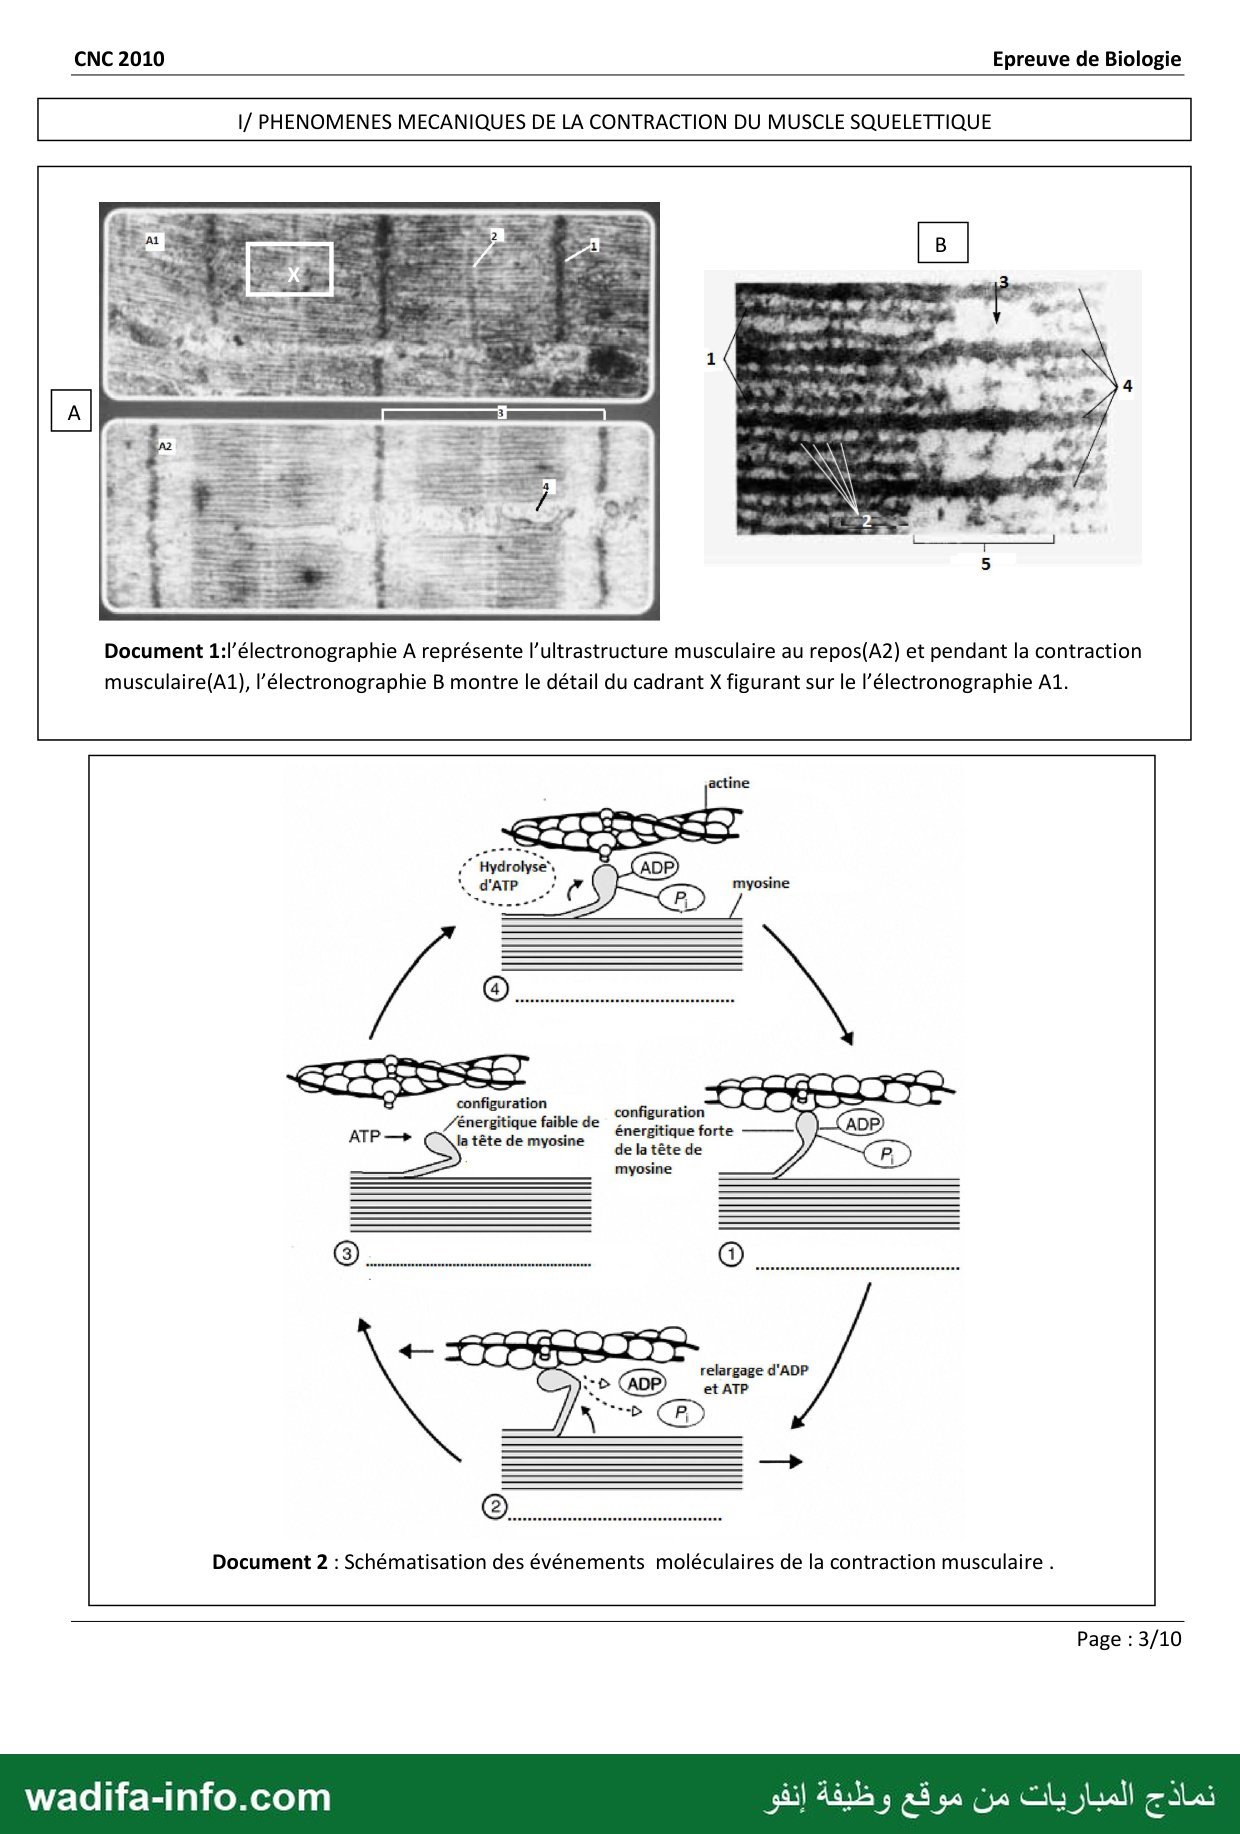
Document 1:l’électronographie A représente l’ultrastructure musculaire au repos(A2) et pendant la contraction
musculaire(A1), l’électronographie B montre le détail du cadrant X figurant sur le l’électronographie A1.
actine
ل : ee
Nd'AP جم myosine
ESS !لا دك الله هله ا © D à
configuration fi ti -- ليبن
/'énergitique faible de pal peste += (ADP)
ATP —+ | جووويم ارا 08
de la tête de CP, )
myosine
+ relargage d'ADP
.e et ATP
: بحب
Document 2 : Schématisation des événements moléculaires de la contraction musculaire ٠
Page : 3/10
نماذج المباريات من موقع وظيفة إنفو wadifa-info.com
CNC 2010 Epreuve de Biologie
I/PHENOMENES METABOLIQUES DE LA CONTRACTION MUSCULAIRE
Temps d'endurance
: . 2 : Max. pour une
Moles D'ATP © activité musculaire
produit par min. = Max.
4 ae - heures
Document 3 :
Mesures de la 2
production d’ATP et 2 :
du temps maximal %
d'endurance au cours as Le
7 : 1 D Pa = imin.
de l'exercice 1 >
musculaire pour eo 7
différentes voies — — —
métaboliques. Phosphocréatine métabolisme anaérobique métabolisme aérobique
ماس
2 —— V,, L:min !
OD=La mM
4 PS EN 5
0 50 100 150 200 250 300 350 Intensité de l'exercice
musculaire (en w)
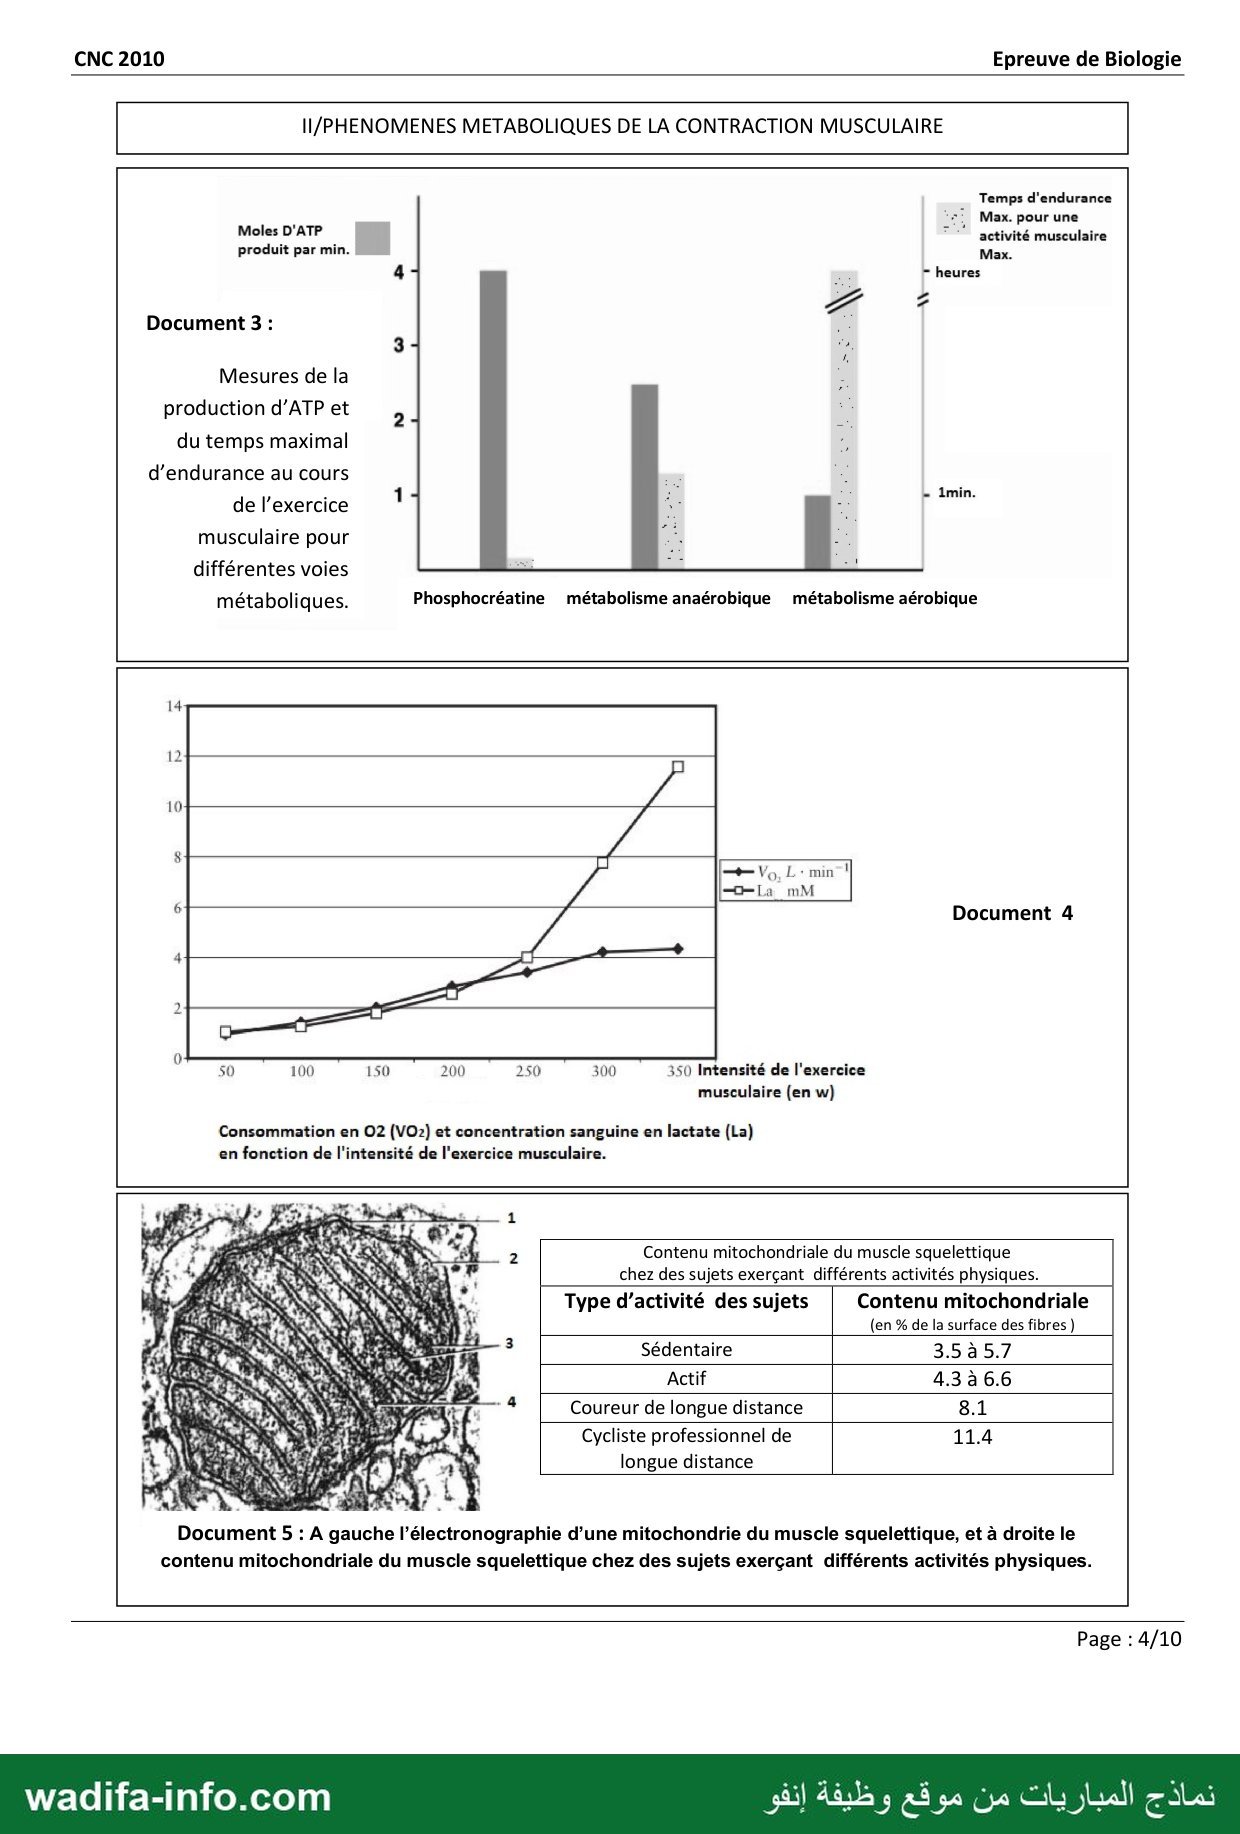
Consommation en O2 (VO2) et concentration sanguine en lactate (La)
en fonction de l'intensité de l'exercice musculaire.
7 اق PE ا لحف
ls 7 ts KE 7 ا 1 2 Contenu mitochondriale du muscle squelettique
WE 4 } ال خا 1 + chez des sujets exerçant différents activités physiques.
h ASE 7 à Fo 0 ءءء SZ . 8 .
ب 0 Sa NS NS À. 1e Type d’activité des sujets Contenu mitochondriale
ل URL Log à NA 8 + BUY و (en 96 de la surface des fibres)
اوري الح PACE — : 3,5 à57
0 الول NOT A 13866
% NN : NA FE RAA L Coureur de longue distance
LRRE 4 Sd ET ds ب Cycliste professionnel de 11.4
اما 039 ال 1 ا longue distance
|? FAQ RL RSC PRE PT «9 8 42.
ART. SONT OMR 4, +.
Document 5 : À gauche l’électronographie d’une mitochondrie du muscle squelettique, et à droite le
contenu mitochondriale du muscle squelettique chez des sujets exerçant différents activités physiques.
Page : 4/10
wadifa-info.com نماذج المباريات من موقع وظيفة إنفو
CNC 2010 Epreuve de Biologie
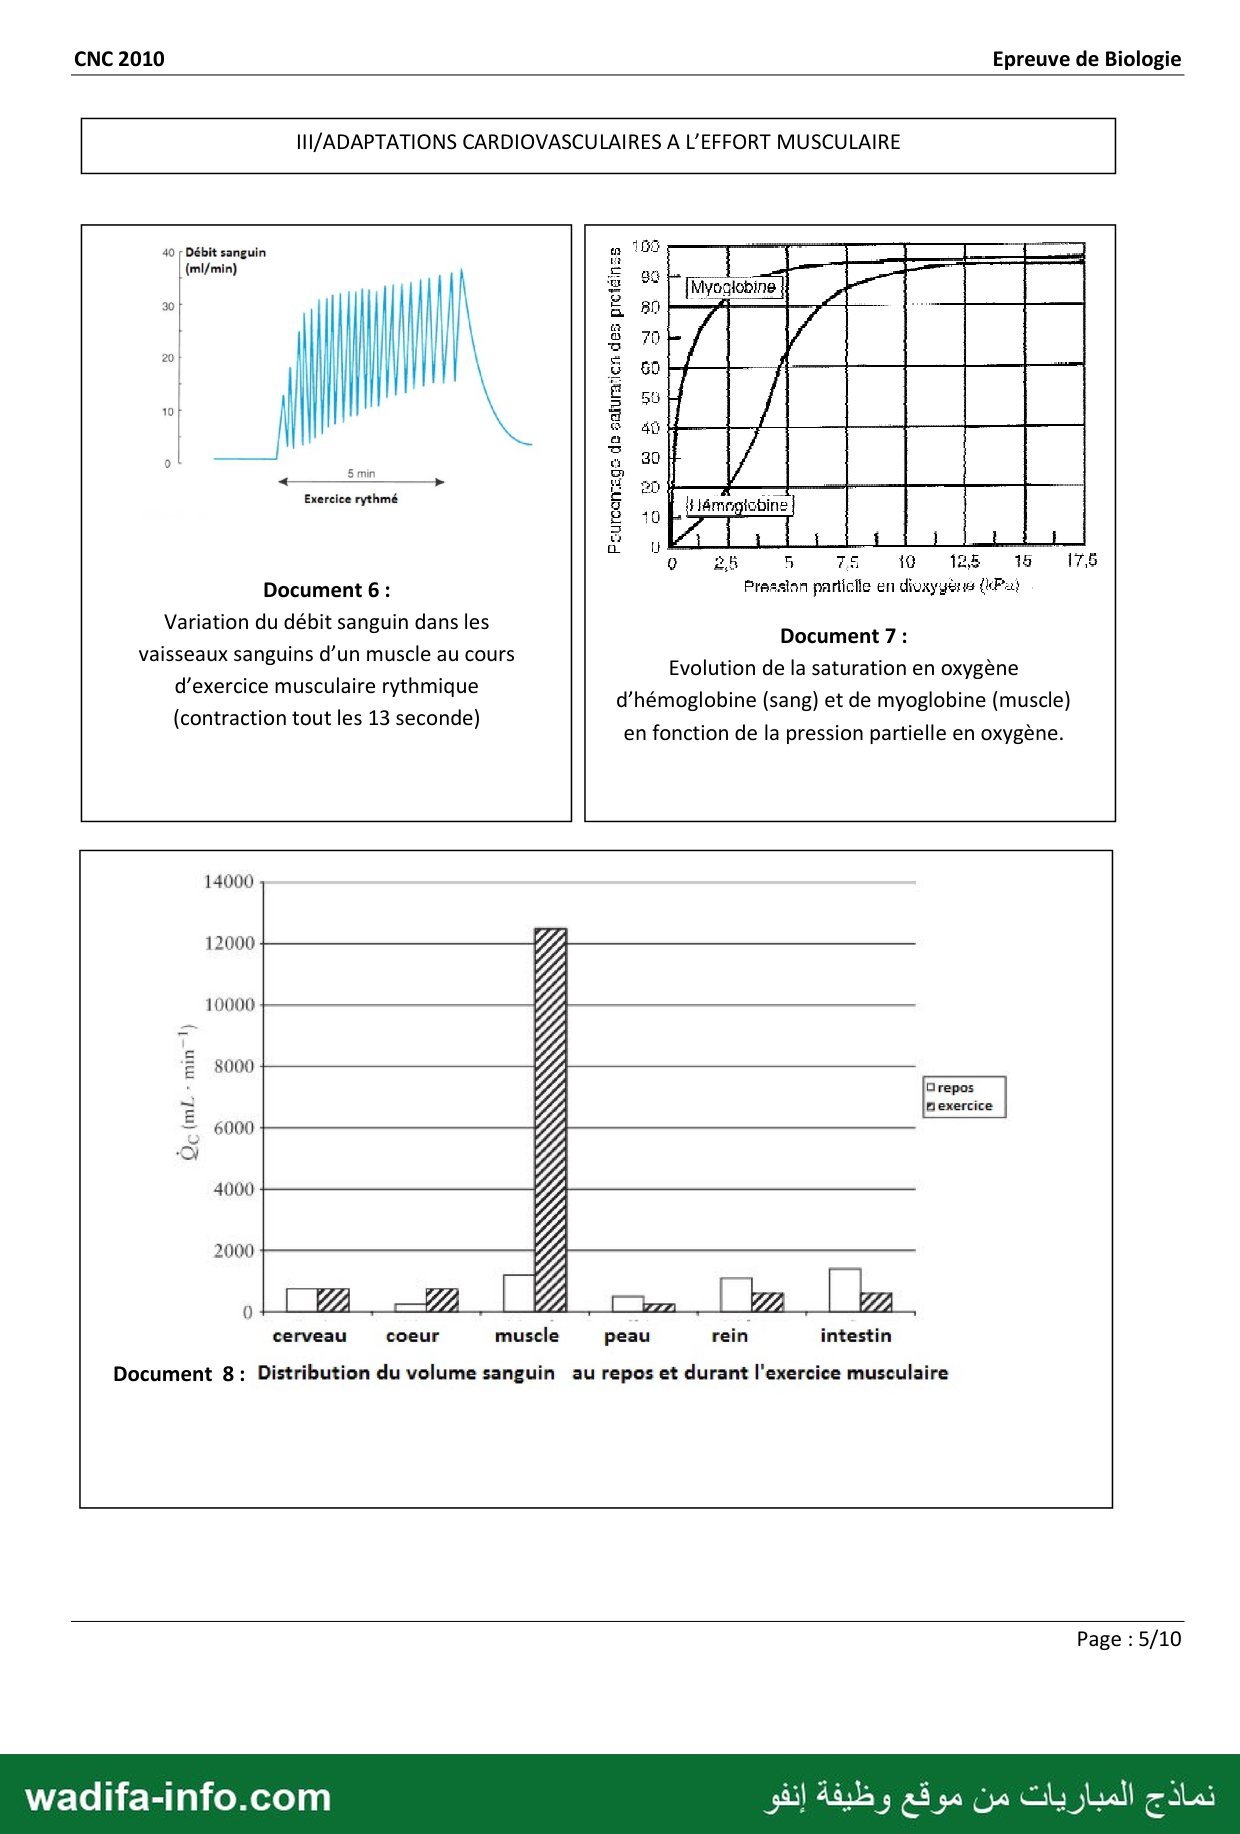
I/ADAPTATIONS CARDIOVASCULAIRES A L’EFFORT MUSCULAIRE
40 | Débit sanguin 8 155 0 105 تلماه الا 7
8 (ml/min) ط go تت تسج "م
١١ ا |
٠ gl Li
ا ١ نل لبج
| | | Le $ 0 f—
ان ان ان ا ,_ ع ال لي
ل و 20
اا لت َه
- ص ER 0-5 7e 10 des 15 85
Document 6 : Prassian paricile en غيرفتل {Par
Variation du débit sanguin dans les 56 باع مم دناه
vaisseaux sanguins d’un muscle au cours : : "
| ١ Evolution de la saturation en oxygène
d'exercice musculaire rythmique — . |
d’'hémoglobine (sang) et de myoglobine (muscle)
(contraction tout les 13 seconde) : ; ; 1
en fonction de la pression partielle en oxygène.
14000
L الا
10000 /
= Bexercice
| Un _ÿ
2000 /
ce 2 [A [ka |
cerveau coeur muscle peau rein intestin
Document 8: Distribution du volume sanguin au repos et durant l'exercice musculaire
Page : 5/10
wadifa-info.com نماذج المباريات من موقع وظيفة إنفو
CNC 2010 Epreuve de Biologie
Sujet ١١ : Quelques aspects du développement des angiospermes.
٠. Stades du développement embryonnaire :
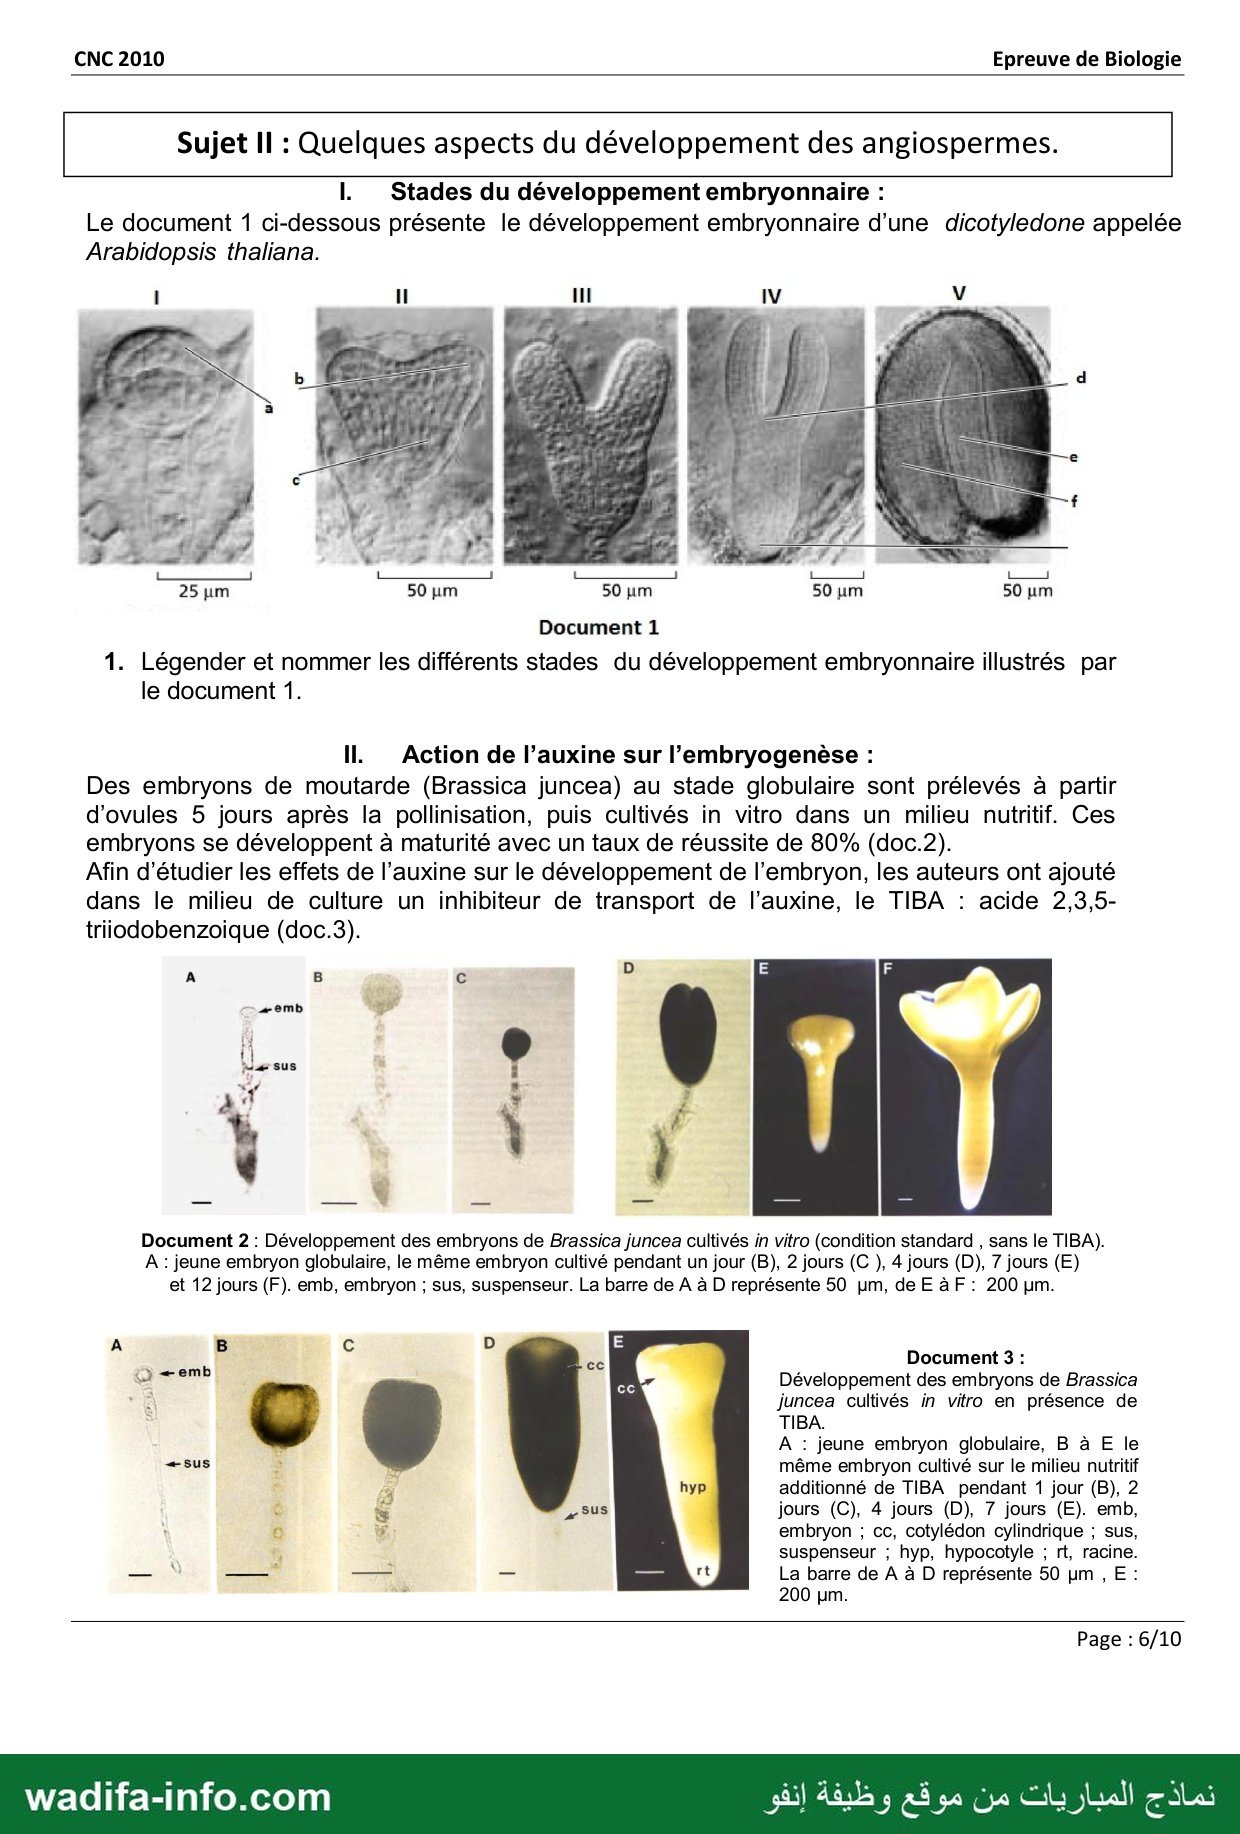
Le document 1 ci-dessous présente le développement embryonnaire d'une dicotyledone appelée
Arabidopsis thaliana.
ا Il 11 IV الا
: — 5 À 7 . 4 LL Re d أل ١
S mir [19 ET, الل 16 م | nd
ف a ا 114 L لوب 4 5 — 7
# 7 رد 1 … 4 1 اد عب * la e + 4 a ——
Cr: للد حي ل img ا ل (0e KE De —:
FT Dh (af 4 LÉ M CAE ا Da
ie Ce. 2 c 7 4 , } É | “A 7 ِ 1 Ja , 7 4 ب {
TARA »را ا
13 Æ. Æ 7 6 كر 7 ا م / / ل ere
Re | لا | الممبممسا لبا
25 um 50 um 50 um 50 um 50 um
Document 1
1. Légender et nommer les différents stades du développement embryonnaire illustrés par
le document 1.
١٠. Action de l’auxine sur l’embryogenèse :
Des embryons de moutarde (Brassica juncea) au stade globulaire sont prélevés à partir
d'ovules 5 jours après la pollinisation, puis cultivés in vitro dans un milieu nutritif. Ces
embryons se développent à maturité avec un taux de réussite de 80% (doc.2).
Afin d'étudier les effets de l’auxine sur le développement de l'embryon, les auteurs ont ajouté
dans le milieu de culture un inhibiteur de transport de l’auxine, le TIBA : acide 2,3,5-
triiodobenzoique (doc.3).
A B c D E F
— emb
me sus
- 2: 4 ب _ _
Document 2 : Développement des embryons de Brassica juncea cultivés in vitro (condition standard , sans le TIBA).
À : jeune embryon globulaire, le même embryon cultivé pendant un jour (B), 2 jours (C (, 4 jours (D), 7 jours (E)
et 12 jours (F). emb, embryon ; sus, suspenseur. La barre de A à D représente 50 um, deE àF : 200 pm.
A D E
1 8 ke “e Document 3 :
Q > a Développement des embryons de Brassica
QU juncea cultivés in vitro en présence de
è TIBA.
8 A : jeune embryon globulaire, B à E le
sus $ 1 même embryon cultivé sur le milieu nutritif
3 additionné de TIBA pendant 1 jour (B), 2
( 5 sus jours (C), 4 jours (D), 7 jours (E). emb,
ا 8 w embryon ; cc, cotylédon cylindrique ; sus,
à k suspenseur ; hyp, hypocotyle ; rt, racine.
— © سب — يي با La barre de A à D représente 50 um , E:
= 200 pm.
Page : 6/10
wadifa-info.com نماذج المباريات من موقع وظيفة إنفو
CNC 2010 Epreuve de Biologie
2. Décrire les différents stades de développement des embryons cultivés en présence et en
absence de TIBA.
3. Discuter les résultats obtenus.
L'examen histologique des embryons cultivés en présence et en absence de TIBA a été
réalisé à l’aide de coupes transversales et longitudinales. Les résultats obtenus sont
présentés dans le tableau suivant :
- Des divisions cellulaires très actives au niveau des cotylédons et
très réduites dans la fente cotylédonnaire.
Embryons au stade - La présence de deux faisceaux conducteurs au niveau de
cotylédonnaire sans TIBA (témoin) | l'hypocotyle. Ces faisceaux se prolongent dans chacun des cotylédons.
- Les différents tissus, méristème apical, épiderme, cortex et
méristème racinaire sont mis en place.
- Au sommet de l'embryon, les divisions cellulaires sont
uniformément actives et parallèles à la surface (périclines).
Embryons au stade cotylédonnaire| - L'hypocotyle est très réduit, présence de six faisceaux conducteurs au
en présence de TIBA niveau de la zone cotylédonnaire (cotylédon cylindrique)
- Le méristème apical est moins développé, mais les autres tissus,
épiderme, cortex et méristème racinaire sont mis en place.
4. Comparer ces résultats.
5. Si l'inhibiteur est ajouté à des embryons au stade cœur, on n'observe aucun effet sur le
développement. Comment expliquer ces résultats ?
1. Etude de mutants d'embryogenèse :
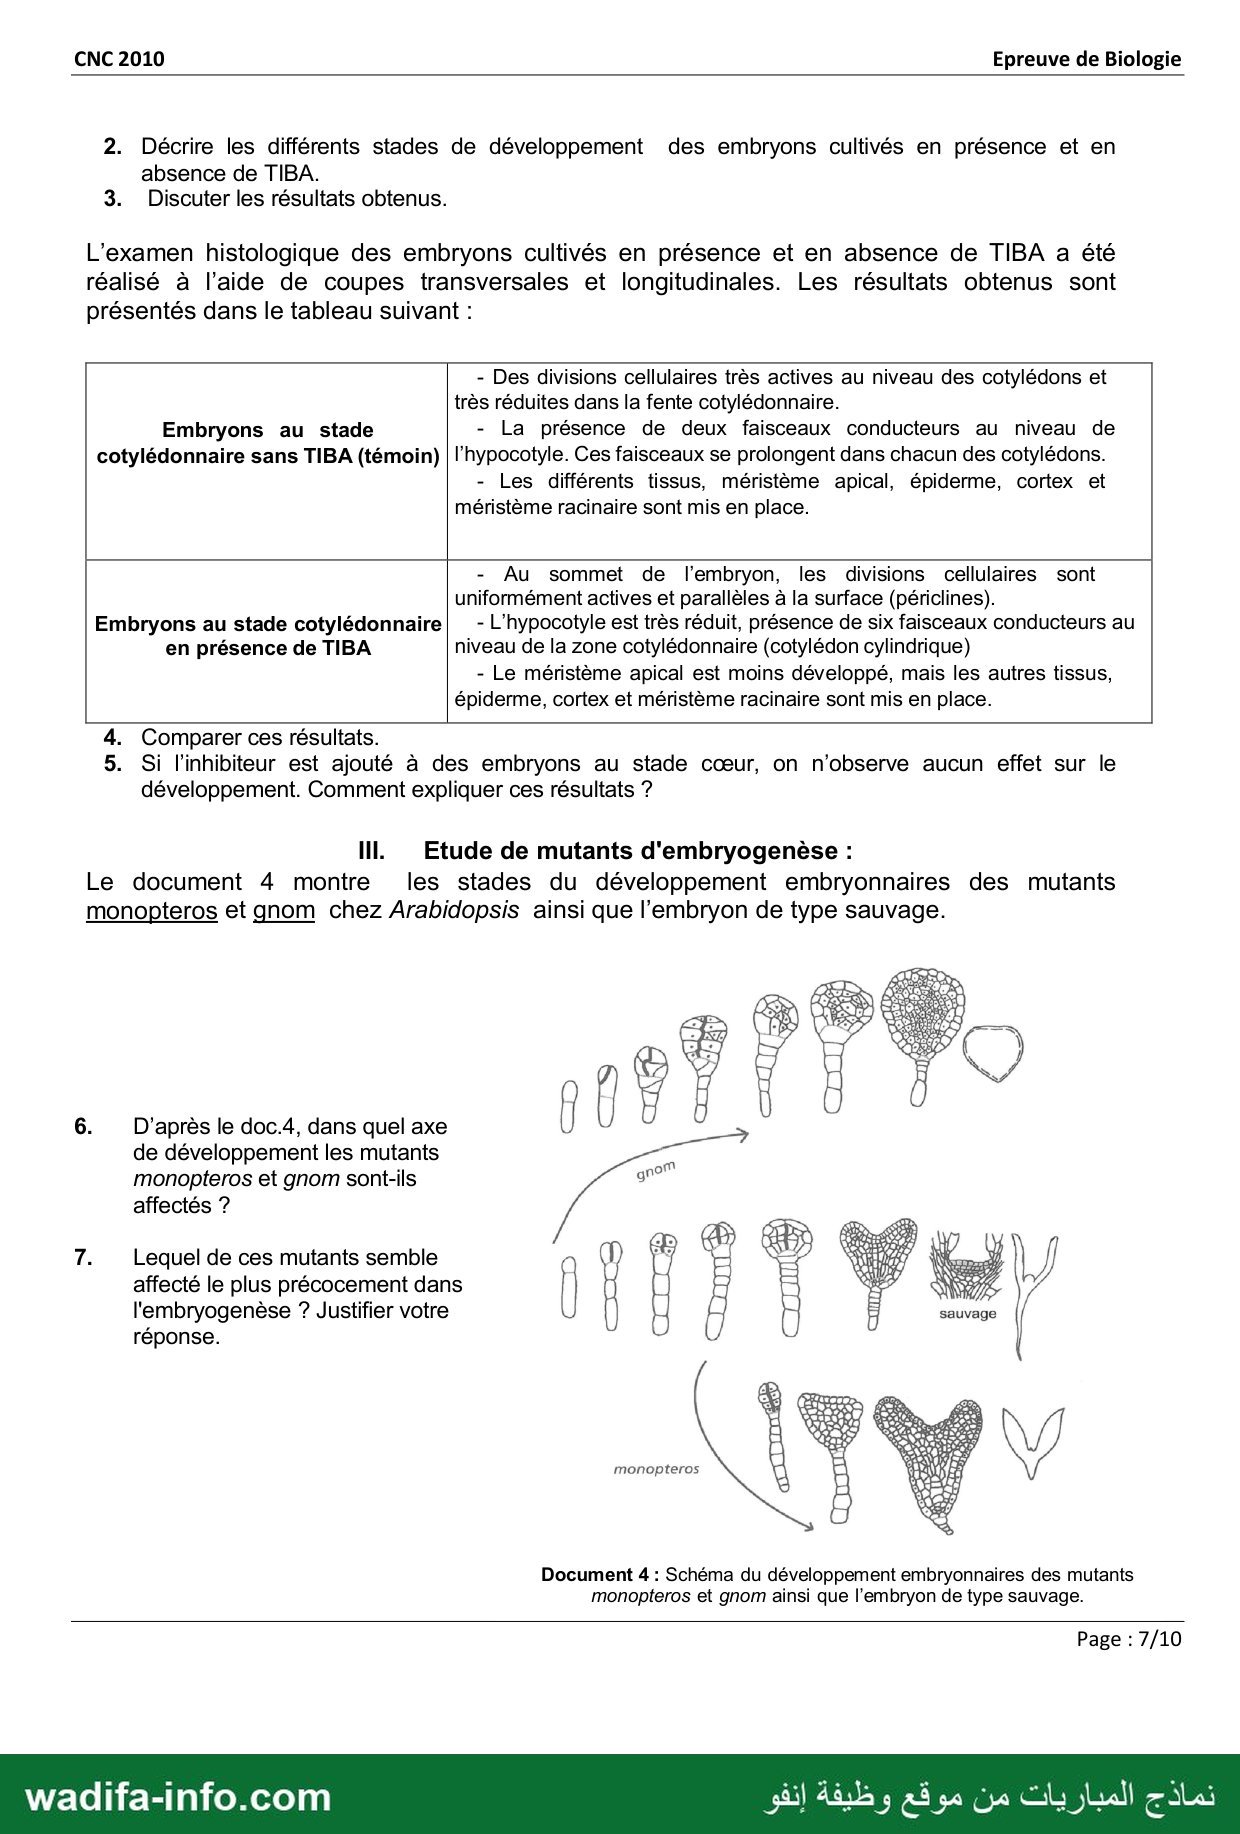
Le document 4 montre les stades du développement embryonnaires des mutants
monopteros et gnom chez Arabidopsis ainsi que l'embryon de type sauvage.
0 LE
OS LES ES
<> FE RS KES
ee ve ee
e = CEE
5 م d 7 Ve)
0 0 0 A 31
0 8 Ù 0 0
6. D’après le doc.4, dans quel axe
de développement les mutants 7
monopteros et gnom sont-ils gn°
affectés ?
85 ذا بل ل
7. Lequel de ces mutants semble لمم ان
affecté le plus précocement dans | 2ه Ne
l'embryogenèse ? Justifier votre H 5 sauvage
réponse. (
89 Re, Fo LD
monopteros 0 3 UE
9 À ess
0 Ke
0 Er
Document 4 : Schéma du développement embryonnaires des mutants
monopteros et gnom ainsi que l'embryon de type sauvage.
Page : 7/10
wadifa-info.com نماذج المباريات من موقع وظيفة إنفو
CNC 60 Epreuve de Biologie
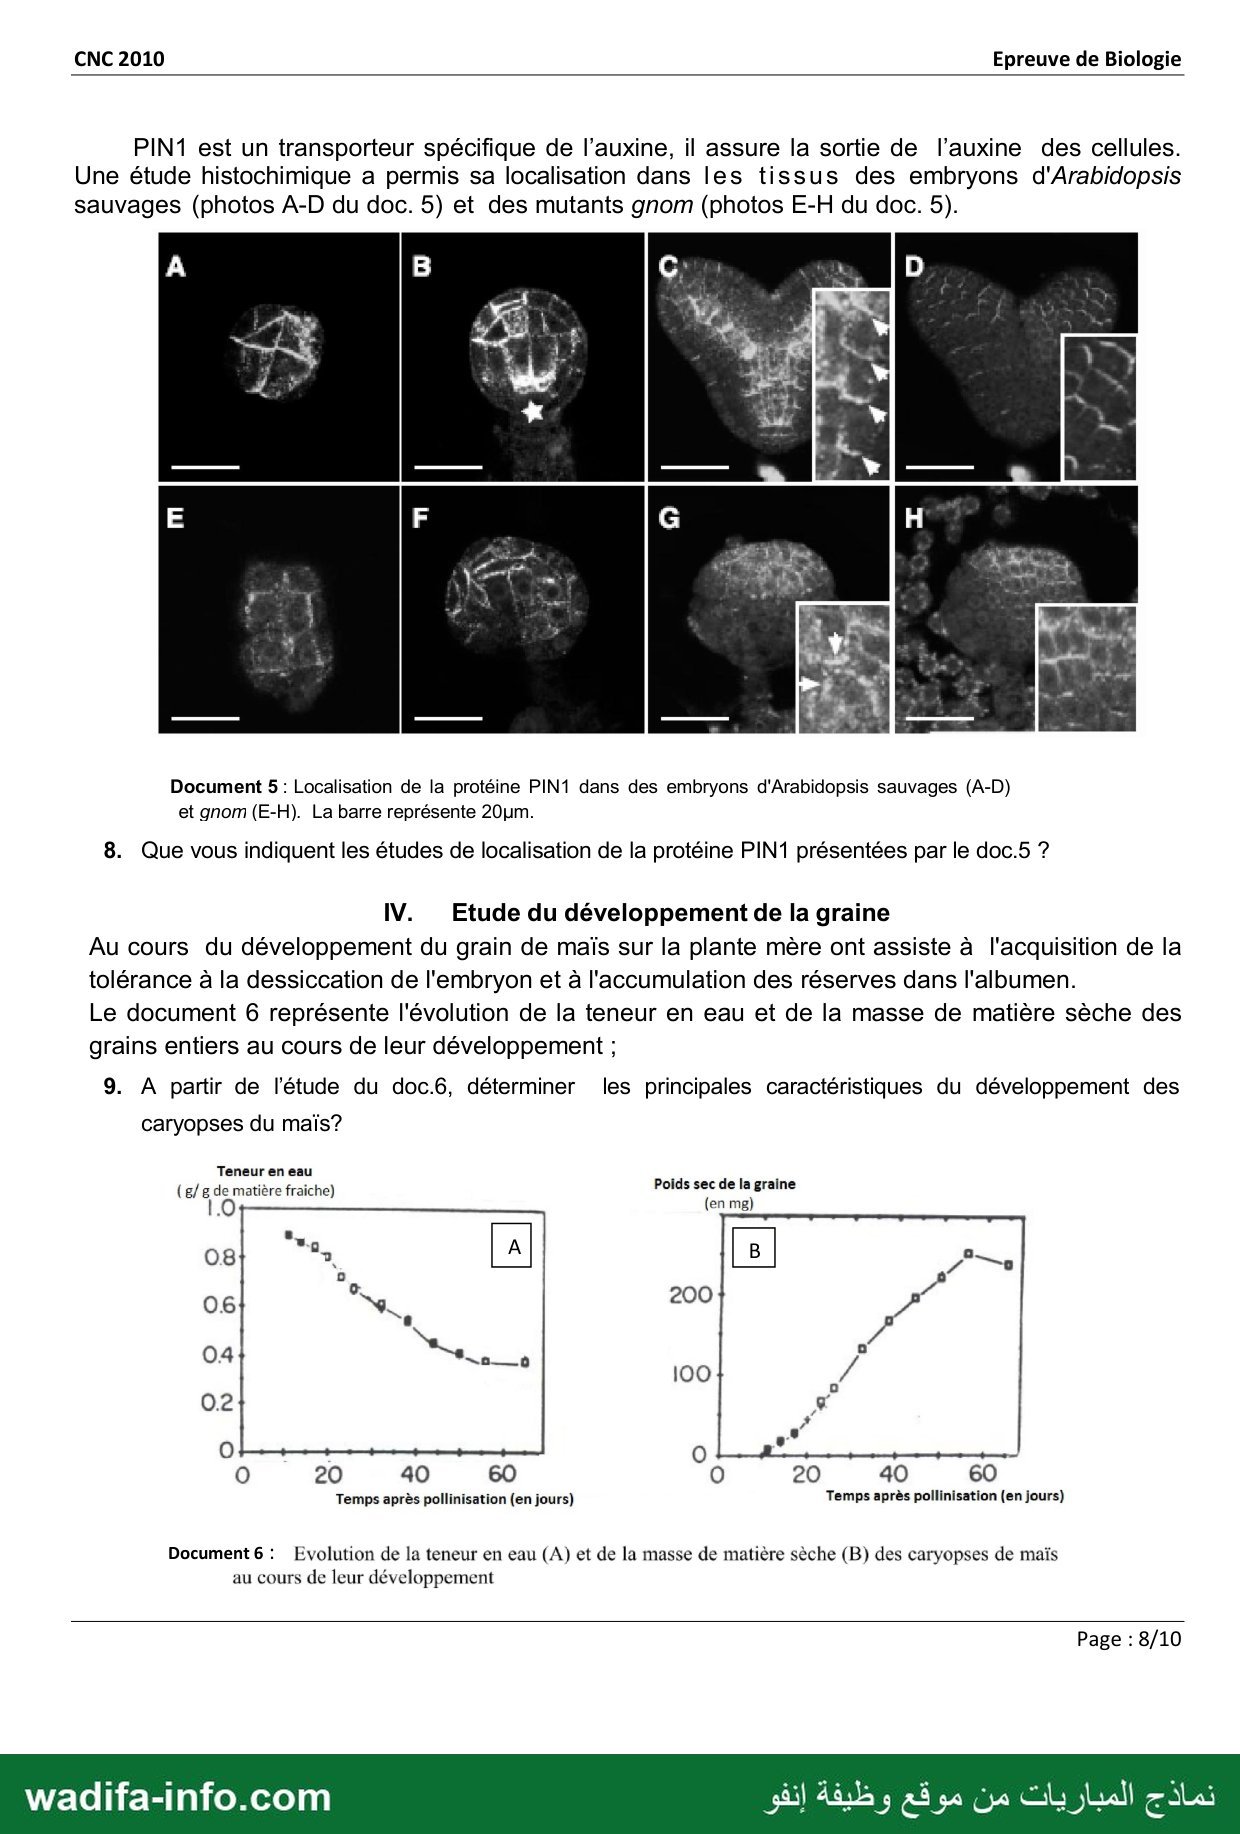
PINS est un transporteur spécifique de l’auxine, il assure la sortie de l’auxine des cellules.
Une étude histochimique a permis sa localisation dans les tissus des embryons d'Arabidopsis
sauvages (photos A-D du doc. 5) et des mutants gnom (photos E-H du doc. 5).
A 5 ا ب
Le Sd 4
-# ٍ 1 7 “a: 1 | El "0
| n اهبر م ا 1 به
ا fact
a © 1 0
Document 5 : Localisation de la protéine PINT dans des embryons d'Arabidopsis sauvages (A-D)
et gnom (E-H). La barre représente 20m.
8. Que vous indiquent les études de localisation de la protéine PIN présentées par le doc.5 ?
IV. Etude du développement de la graine
Au cours du développement du grain de maïs sur la plante mère ont assiste à l'acquisition de la
tolérance à la dessiccation de l'embryon et à l'accumulation des réserves dans l'albumen.
Le document 6 représente l'évolution de la teneur en eau et de la masse de matière sèche des
grains entiers au cours de leur développement ;
9. A partir de l'étude du doc.6, déterminer les principales caractéristiques du développement des
caryopses du maïs?
Teneur en eau
) g/ 8 de matière fraiche) Poids sec de la graine
| © (en mg)
de a
08 بن [al Ps
06 ss. 200 مو
04 L _ Le] 8
100 rs
0.2 F
0 0 ب 8
0 20 40 60 0 20 40 60
Temps après pollinisation (en jours) Temps après pollinisation (en jours)
Document 6 : Evolution de la teneur en eau (A) et de la masse de matière sèche (B) des caryopses de maïs
au cours de leur développement
Page : 8/10
wadifa-info.com نماذج المباريات من موقع وظيفة إنفو
CNC 2010 Epreuve de Biologie
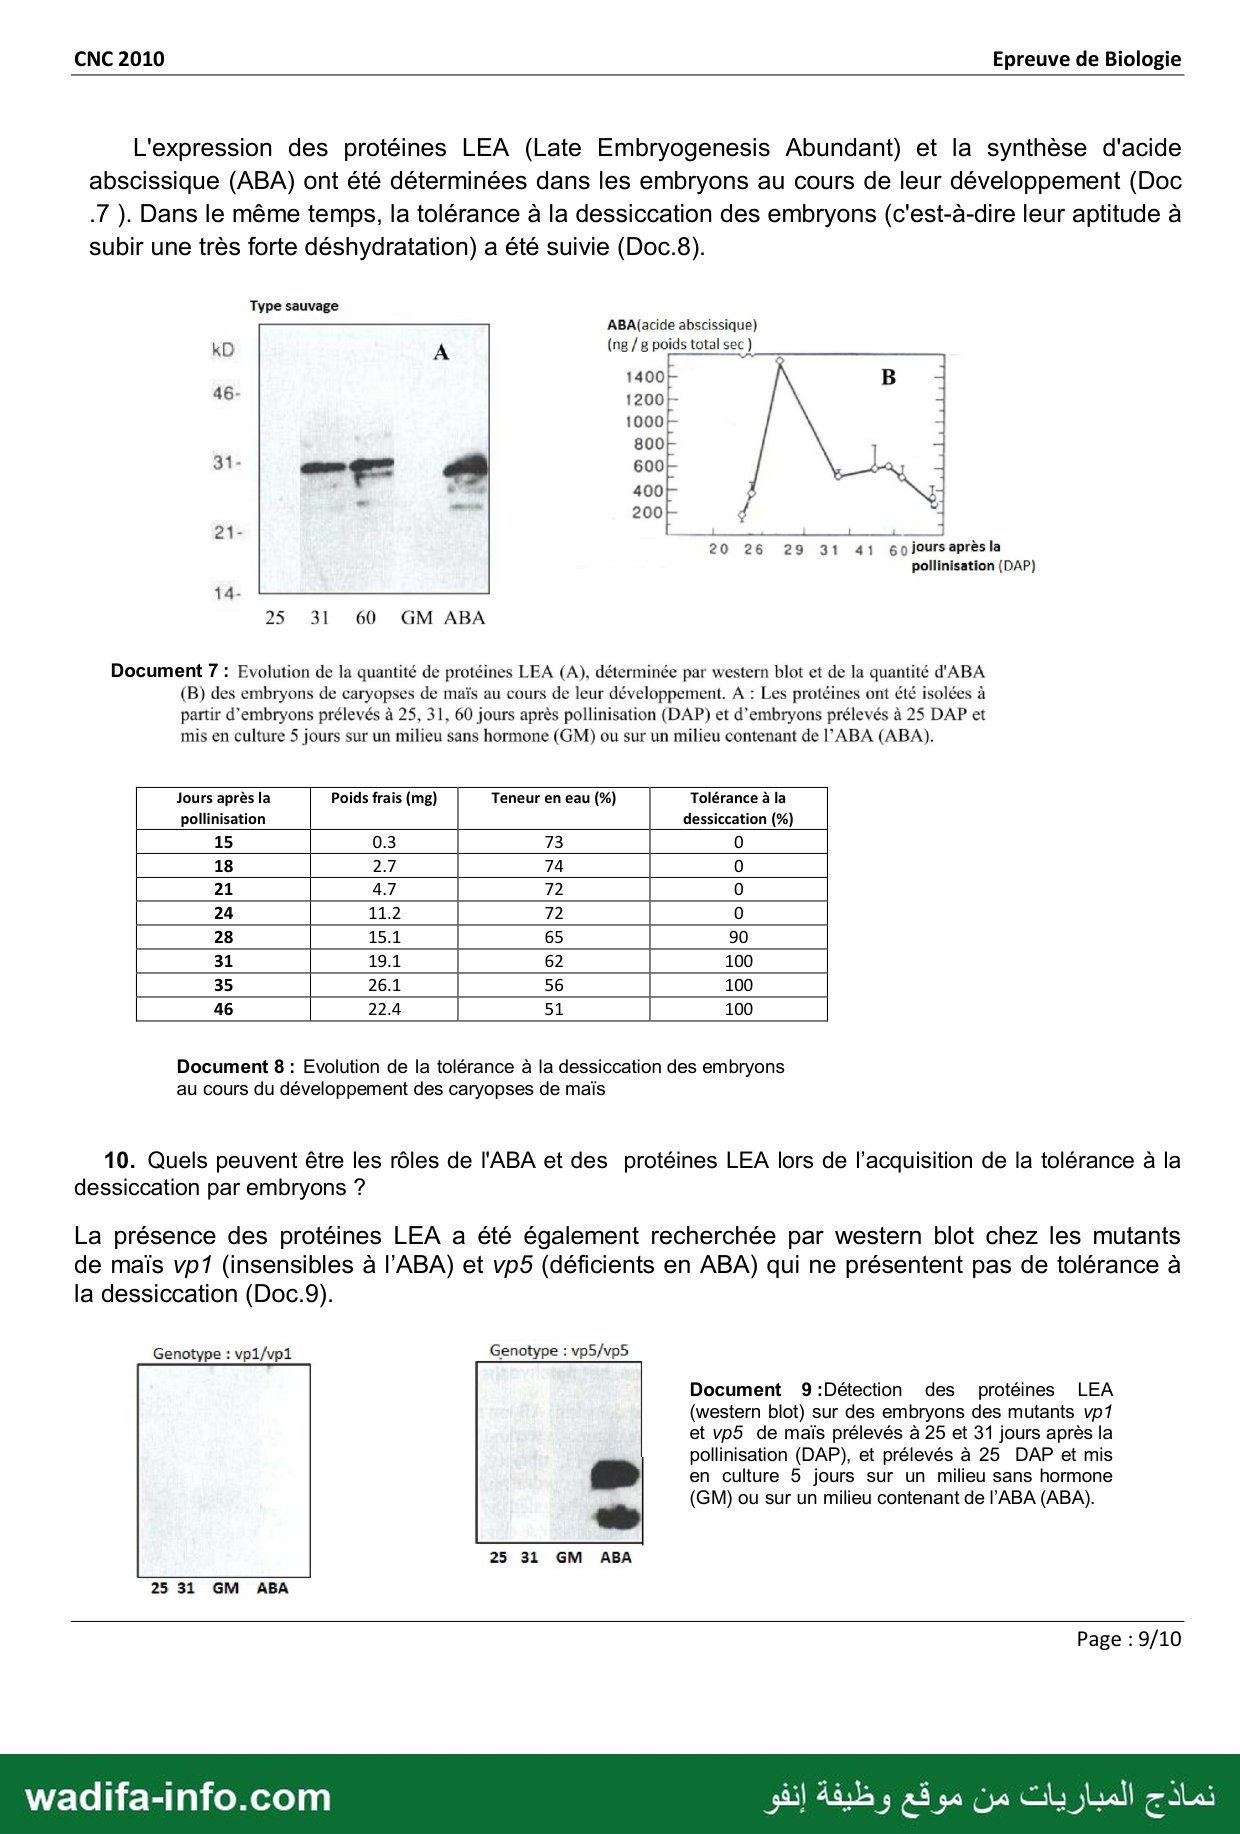
L'expression des protéines LEA (Late Embryogenesis Abundant) et la synthèse d'acide
abscissique (ABA) ont été déterminées dans les embryons au cours de leur développement (Doc
.7 ). Dans le même temps, la tolérance à la dessiccation des embryons (c'est-à-dire leur aptitude à
subir une très forte déshydratation) a été suivie (Doc.8).
Type sauvage
ABA(acide abscissique)
(ng / ع poids total sec )
kKD A ملا ل
1400 F B
46- 1200/-
1000!
800
31- يم 600 و
جلا ج85 400 2 NY |
. ÿ 200 d “1
21- لببتتتلتلسستسسل |
20 26 29 31 41 6ojiours aprèsla
pollinisation (DAP)
25 31 60 (GM ABA
Document 7 : Evolution de la quantité de protéines LEA (A), déterminée par western blot et de la quantité d'ABA
(B) des embryons de caryopses de maïs au cours de leur développement. A : Les protéines ont été isolées à
partir d’embryons prélevés à 25, 31, 60 jours après pollinisation (DAP) et d'embryons prélevés à 25 DAP et
mis en culture 5 jours sur un milieu sans hormone (GM) ou sur un milieu contenant de l’ABA (ABA).
Jours après la Poids frais (mg) Teneur en eau (%) Tolérance à la
pollinisation dessiccation (%)
ا 21 | 47 | [0 |
24 | 112 [0 |
28 | 151 7 90 |
LL 31 | + |
ا 35 |2610 |
460) 2240
Document 8 : Evolution de la tolérance à la dessiccation des embryons
au cours du développement des caryopses de maïs
10. Quels peuvent être les rôles de l'ABA et des protéines LEA lors de l'acquisition de la tolérance à la
dessiccation par embryons ?
La présence des protéines LEA a été également recherchée par western blot chez les mutants
de maïs vp1 (insensibles à l’'ABA) et vp5 (déficients en ABA) qui ne présentent pas de tolérance à
la dessiccation (Doc.9).
Genotype : : 1 Genotype : vp5/vp5
Document 9 :Détection des protéines LEA
(western blot) sur des embryons des mutants vp1
et vp5 de maïs prélevés à 25 et 31 jours après la
pollinisation (DAP), et prélevés à 25 DAP et mis
en culture 5 jours sur un milieu sans hormone
(GM) ou sur un milieu contenant de l’ABA (ABA).
25 31 GM ABA
25 31 GM ABA
Page : 9/10
wadifa-info.com نماذج المباريات من موقع وظيفة إنفو
CNC 2010 Epreuve de Biologie
11. Ces résultats sont-ils en accord avec vos précédentes conclusions +
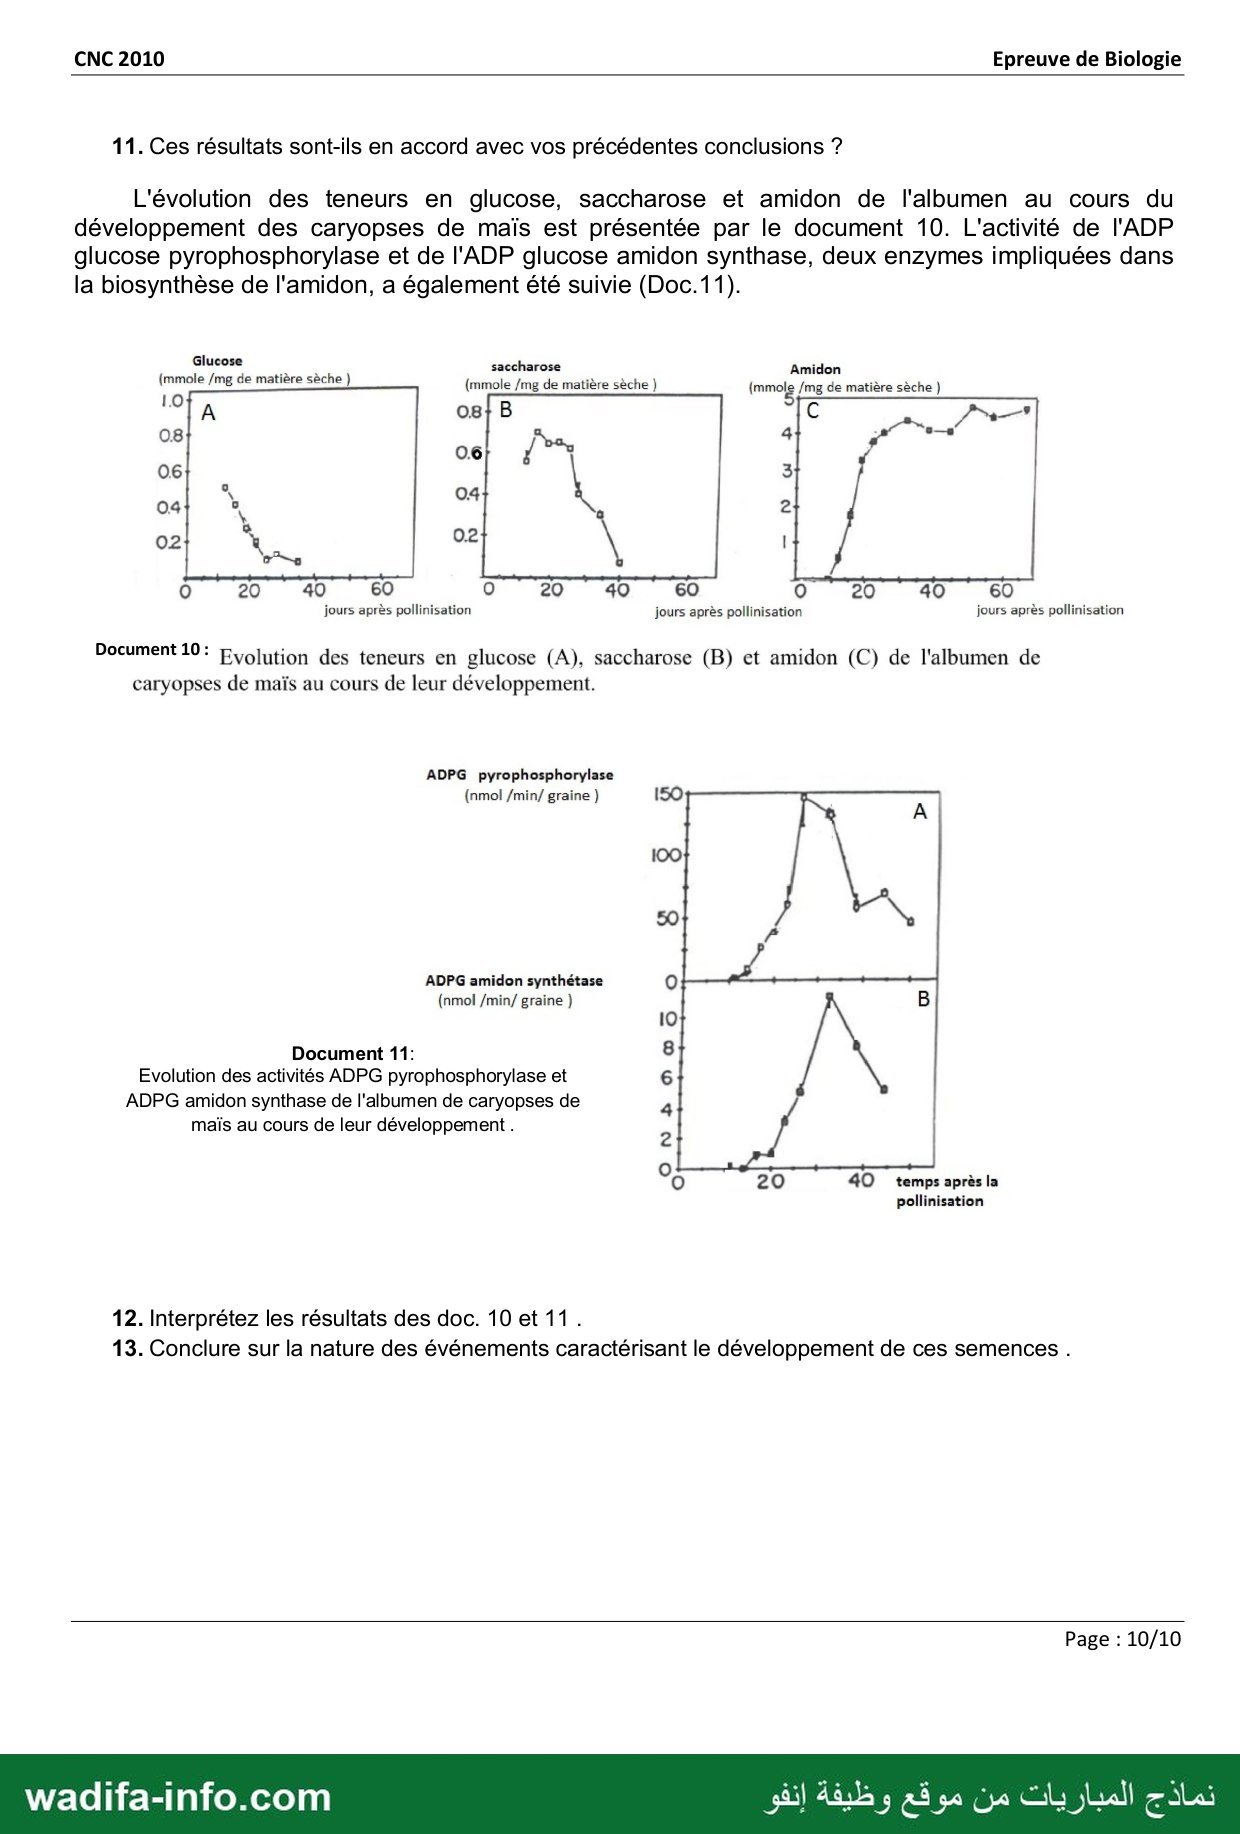
L'évolution des teneurs en glucose, saccharose et amidon de l'albumen au cours du
développement des caryopses de maïs est présentée par le document 10. L'activité de l'ADP
glucose pyrophosphorylase et de l'ADP glucose amidon synthase, deux enzymes impliquées dans
la biosynthèse de l'amidon, a également été suivie (Doc.11).
Glucose saccharose Amidon
{mmole /mg de matière sèche ) {mmole /mg de matière sèche ( اليل /mg de matière sèche )
A 084 8 € Pen
08 AL 4 4
06 3
04 0 04 2
8 02 À
02 I
ميا
O 20 40 60 O 20 40 60 O 20 40 60
jours après pollinisation jours après pollinisation jours après pollinisation
Document 10: E,6lution des teneurs en glucose (A), saccharose (B) et amidon (C) de l'albumen de
caryopses de maïs au cours de leur développement.
ADPG pyrophosphorylase
(nmol /min/ graine ( 150 |
100
ADPG amidon synthétase 0
(nmol /min/ graine ( B
Document 11: 8
Evolution des activités ADPG pyrophosphorylase et 6
ADPG amidon synthase de l'albumen de caryopses de 4
maïs au cours de leur développement . 2
0 20 40 temps après la
pollinisation
12. Interprétez les résultats des doc. 10 et 11.
13. Conclure sur la nature des événements caractérisant le développement de ces semences .
Page : 10/10
wadifa-info.com نماذج المباريات من موقع وظيفة إنفو
✅ التصحيح المقترح
هذا تصحيح مقترح من إعداد فريق wadifa-info لمساعدتك على فهم منهجية الإجابة — وليس تصحيحاً رسمياً صادراً عن الإدارة المنظِّمة. أسئلة هذا الامتحان محررة بالفرنسية، لذلك التصحيح محرر بالفرنسية أيضاً.
Ce modèle est l'épreuve de Biologie du Concours National Commun (CNC) 2010, filière BCPST, d'admission aux grandes écoles d'ingénieurs. Durée : 4 heures. Deux sujets : Sujet I, une synthèse sur documents (« Contraction musculaire et adaptation physiologique à l'effort physique », documents 1 à 8) ; Sujet II, des questions sur le développement des angiospermes (embryogenèse, auxine, mutants, maturation de la graine de maïs). Voici une correction proposée : un plan détaillé avec l'exploitation de chaque document pour le Sujet I, puis les réponses aux questions 1 à 13 du Sujet II.
💡 Synthèse sur documents : le jury attend un texte construit (introduction, parties titrées, conclusion), où chaque document est cité, décrit avec ses valeurs, puis interprété, et relié aux connaissances. Ne faites pas une suite de commentaires isolés : chaque document doit servir une idée du plan.
Sujet I — Contraction musculaire et adaptation physiologique à l'effort
Introduction
Le muscle squelettique convertit l'énergie chimique de l'ATP en travail mécanique. Lors d'un effort, la demande en ATP peut être multipliée par plusieurs dizaines : l'organisme doit alors renouveler l'ATP (voies métaboliques) et approvisionner le muscle en O2 et en nutriments (adaptations cardiovasculaires). Problématique : comment la contraction se produit-elle à l'échelle moléculaire, et comment le métabolisme et la circulation s'ajustent-ils à l'intensité et à la durée de l'effort ? Plan : I. mécanismes de la contraction ; II. renouvellement de l'ATP ; III. adaptations cardiovasculaires.
I. Phénomènes mécaniques de la contraction (doc. 1 et 2)
- Doc. 1A : la myofibrille est une succession de sarcomères (repère 3), unités délimitées par deux stries Z. En comparant A2 (repos) et A1 (contraction), la distance entre stries Z diminue : le sarcomère se raccourcit ; les bandes claires (bande I, zone H) se réduisent alors que la bande sombre A garde sa longueur.
- Doc. 1B (détail du cadre X) : on distingue des filaments épais (myosine) et des filaments fins (actine) qui s'interpénètrent, reliés par des ponts transversaux (têtes de myosine). Une région centrale ne contient que des filaments épais (zone H).
- Interprétation : les filaments ne changent pas de longueur ; ils glissent les uns sur les autres (modèle du glissement des filaments) : les filaments d'actine sont tirés vers le centre du sarcomère.
- Doc. 2 — cycle des ponts actine-myosine (légendes à compléter) : ① fixation de la tête de myosine, chargée d'ADP + Pi et en configuration de haute énergie, sur l'actine (formation du complexe acto-myosine) ; ② libération de Pi puis d'ADP et pivotement de la tête (« coup de rame ») : le filament d'actine glisse ; ③ fixation d'une molécule d'ATP sur la tête : détachement de l'actine (tête en configuration de basse énergie) ; ④ hydrolyse de l'ATP (ATP → ADP + Pi) : la tête se redresse et retrouve sa configuration de haute énergie, prête pour un nouveau cycle.
- Connaissances à ajouter : le cycle est déclenché par le Ca2+ libéré par le réticulum sarcoplasmique après le potentiel d'action (couplage excitation-contraction : Ca2+ + troponine → déplacement de la tropomyosine → sites de fixation de l'actine démasqués). Sans ATP, les têtes restent fixées (rigidité cadavérique). L'ATP est donc indispensable à la fois au « coup de rame » et au détachement.
II. Phénomènes métaboliques : renouvellement de l'ATP (doc. 3, 4, 5)
- Doc. 3 : trois voies de régénération de l'ATP aux propriétés opposées : phosphocréatine (créatine-P + ADP → créatine + ATP) : débit maximal (≈ 4 mol d'ATP/min) mais durée très courte (quelques secondes) ; glycolyse anaérobie (fermentation lactique) : débit intermédiaire (≈ 2,5 mol/min), endurance de l'ordre de la minute ; métabolisme aérobie (respiration) : débit le plus faible (≈ 1 mol/min) mais endurance de plusieurs heures. Conclusion : la phosphocréatine sert les efforts brefs et intenses (sprint, saut), la voie anaérobie les efforts intenses de 1 à 2 min, la voie aérobie les efforts prolongés.
- Doc. 4 : la consommation d'O2 (VO2) croît presque linéairement avec la puissance (≈ 1 L·min−1 à 50 W, ≈ 3,4 à 250 W) puis plafonne vers ≈ 4,2–4,3 L·min−1 au-delà de 300 W : c'est la VO2max. La lactatémie reste basse (≈ 1 à 2,5 mM) jusqu'à 200 W puis augmente brutalement (≈ 4 mM à 250 W, ≈ 11,5 mM à 350 W) : seuil lactique vers 200–250 W. Au-delà, l'apport d'O2 ne couvre plus les besoins et la glycolyse anaérobie complète la production d'ATP, avec accumulation de lactate (fatigue, acidose).
- Doc. 5 : la mitochondrie (membrane externe, membrane interne repliée en crêtes, matrice) est le siège du cycle de Krebs (matrice) et de la chaîne respiratoire et de l'ATP synthase (membrane interne) : c'est l'organite de la voie aérobie. Le tableau montre que le volume mitochondrial des fibres augmente avec l'entraînement en endurance : 3,5–5,7 % chez le sédentaire, 4,3–6,6 % chez l'actif, 8,1 % chez le coureur de fond, 11,4 % chez le cycliste professionnel. Adaptation à l'entraînement : plus de mitochondries = plus grande capacité oxydative, seuil lactique et VO2max plus élevés.
III. Adaptations cardiovasculaires à l'effort (doc. 6, 7, 8)
- Doc. 6 : au repos, le débit sanguin du muscle est faible et constant (quelques mL/min). Pendant l'exercice rythmé, il oscille : chute à chaque contraction (les vaisseaux sont comprimés) et pic à chaque relâchement ; le débit moyen et les pics augmentent progressivement (jusqu'à ≈ 35 mL/min) : hyperémie d'exercice par vasodilatation des artérioles musculaires (facteurs locaux : baisse de PO2, hausse de CO2, H+, K+, adénosine, NO). Après l'effort, le débit redescend lentement (dette d'O2 à rembourser).
- Doc. 7 : la courbe de saturation de la myoglobine est hyperbolique et très à gauche (≈ 80 % saturée dès 2,5 kPa), celle de l'hémoglobine est sigmoïde (≈ 20 % seulement à 2,5 kPa, ≈ 60 % vers 5 kPa, ≈ 95 % aux fortes PO2 du poumon). La myoglobine a une affinité bien plus forte pour O2 : dans le muscle actif où la PO2 est basse, l'hémoglobine libère son O2 que la myoglobine capte ; la myoglobine constitue une réserve d'O2 et facilite sa diffusion vers les mitochondries. (L'effet Bohr — hausse de CO2, d'acidité et de température — accentue la libération par l'hémoglobine.)
- Doc. 8 : au repos le débit cardiaque (≈ 5,2 L/min en sommant les organes représentés) est surtout destiné à l'intestin (≈ 1,4 L/min), au muscle (≈ 1,2), au rein (≈ 1,1) et au cerveau (≈ 0,75). À l'effort, il atteint ≈ 15 L/min (environ ×3) et le muscle en reçoit ≈ 12,5 L/min (×10), le cœur ≈ ×3 ; le cerveau est inchangé ; peau, rein et intestin reçoivent moins (vasoconstriction d'origine sympathique). Il y a donc augmentation du débit cardiaque (fréquence et volume d'éjection systolique) et redistribution du sang vers les muscles actifs.
Conclusion
La contraction repose sur le glissement des filaments d'actine et de myosine, consommateur d'ATP. L'effort mobilise successivement la phosphocréatine, la glycolyse anaérobie et la respiration selon son intensité et sa durée. L'organisme s'adapte à court terme (débit cardiaque, vasodilatation musculaire, redistribution, transfert d'O2 de l'hémoglobine à la myoglobine) et à long terme par l'entraînement (mitochondries plus nombreuses, VO2max plus élevée). Ouverture : régulation nerveuse (centres cardio-respiratoires) et hormonale (adrénaline) de ces ajustements.
Sujet II — Quelques aspects du développement des angiospermes
1. Stades de l'embryogenèse d'Arabidopsis (doc. 1)
- I : stade globulaire — a : protoderme (assise externe, future épiderme) de l'embryon globulaire, porté par le suspenseur.
- II : stade cœur — b : ébauche (primordium) de cotylédon ; c : procambium / tissus internes de l'axe (réponse probable pour b et c).
- III : stade torpille (début) — cotylédons allongés, axe hypocotyle-radicule qui s'allonge.
- IV : stade torpille avancé (cotylédons allongés) — d : région du méristème apical caulinaire, entre les cotylédons (réponse probable) ; le trait non lettré en bas désigne le pôle racinaire (radicule).
- V : embryon mature (stade « cotylédons recourbés ») dans la graine — e et f : cotylédons et axe embryonnaire repliés (réponse probable pour l'attribution exacte de e et f).
L'embryon passe d'une symétrie radiale (globulaire) à une symétrie bilatérale (cœur, deux cotylédons) avec un axe apico-basal (méristème caulinaire – méristème racinaire).
2. Développement in vitro avec et sans TIBA (doc. 2 et 3)
- Sans TIBA (doc. 2) : A, embryon globulaire porté par un long suspenseur ; B (1 j), globulaire plus gros ; C (2 j), globulaire tardif / transition ; D (4 j), stade cœur à torpille avec deux lobes cotylédonaires ; E (7 j), embryon allongé : hypocotyle et deux cotylédons ; F (12 j), embryon mature à deux cotylédons bien séparés, hypocotyle et racine.
- Avec TIBA (doc. 3) : A et B (1 j), C (2 j) : l'embryon grossit en restant sphérique ; D (4 j) : embryon allongé en cylindre, sans lobes cotylédonaires, le sommet formant un bourrelet (cc) ; E (7 j) : embryon en « trompette » : un cotylédon cylindrique unique (cotylédons soudés en collerette) au sommet, un hypocotyle et une racine présents.
3. Discussion
L'inhibition du transport polarisé de l'auxine n'empêche ni la croissance ni la mise en place de l'axe apico-basal (hypocotyle, racine), mais empêche la séparation des deux cotylédons : la transition symétrie radiale → symétrie bilatérale est bloquée. Le transport polarisé de l'auxine crée normalement deux maxima d'auxine au sommet de l'embryon globulaire, qui déterminent les deux primordia cotylédonaires ; avec le TIBA, l'auxine se répartit uniformément sur le pourtour du sommet, d'où un anneau de croissance (cotylédon cylindrique).
4. Comparaison histologique
| Critère | Témoin | TIBA |
|---|---|---|
| Divisions au sommet | Localisées dans les cotylédons, très réduites dans la fente cotylédonaire | Uniformes et périclines sur tout le sommet |
| Vascularisation | 2 faisceaux dans l'hypocotyle, prolongés dans chaque cotylédon | Hypocotyle très réduit, 6 faisceaux dans la zone cotylédonaire |
| Méristème apical | Normal | Moins développé |
| Épiderme, cortex, méristème racinaire | En place | En place |
Le transport polarisé de l'auxine contrôle donc la localisation des divisions (formation de foyers distincts → deux cotylédons et une zone apicale peu divisée où s'installe le méristème caulinaire) et le patron de vascularisation (les faisceaux suivent les flux d'auxine). La différenciation des tissus de base n'en dépend pas.
5. Absence d'effet au stade cœur
Au stade cœur, les deux primordia cotylédonaires et la symétrie bilatérale sont déjà établis : la fenêtre pendant laquelle le transport polarisé de l'auxine détermine l'organisation (transition globulaire → cœur) est passée. L'inhibiteur n'agit que pendant cette période critique ; ensuite, le développement des organes déjà initiés se poursuit sans en dépendre.
6. Axe affecté chez monopteros et gnom
Les deux mutants sont affectés dans l'axe apico-basal : monopteros forme des cotylédons mais pas d'hypocotyle ni de racine (partie basale absente) ; gnom donne un embryon arrondi, sans pôles apical et basal distincts (ni racine ni véritables cotylédons).
7. Mutant le plus précoce
gnom : dès la première division du zygote, le plan de division est anormal (division quasi symétrique au lieu de la division asymétrique qui sépare la cellule apicale de la cellule basale) ; chez monopteros, les anomalies n'apparaissent qu'au stade octant / globulaire, dans les cellules qui doivent former la base de l'embryon (hypophyse, futur pôle racinaire).
8. Localisation de PIN1 (doc. 5)
- Sauvage : aux premiers stades (A), PIN1 est présent sur toutes les membranes, sans polarité ; au stade globulaire (B), il se concentre sur les faces basales des cellules centrales (pro-vasculaires), vers l'hypophyse (étoile) : flux d'auxine vers le pôle basal (future racine). Au stade cœur (C), PIN1 est polarisé dans l'épiderme vers les pointes des cotylédons (flèches) et vers la base dans le cylindre central : l'auxine converge vers les sommets des cotylédons puis redescend par les futurs tissus conducteurs. D : PIN1 dans les cellules épidermiques des cotylédons.
- gnom : PIN1 est présent mais réparti sans polarité coordonnée (E à H) : pas de flux orienté vers la base.
- Conclusion : GNOM est nécessaire à l'adressage polarisé de PIN1 (il intervient dans le recyclage vésiculaire des protéines membranaires) ; sans lui, le transport polarisé de l'auxine est désorganisé, d'où l'absence d'axe apico-basal (phénotype proche d'un traitement précoce par un inhibiteur du transport d'auxine).
9. Développement des caryopses de maïs (doc. 6)
- Teneur en eau (A) : élevée au début (≈ 0,88 g/g de matière fraîche à 10 jours), elle diminue régulièrement jusqu'à ≈ 0,37 g/g vers 55–65 jours.
- Matière sèche (B) : quasi nulle jusqu'à ≈ 10 jours, puis augmentation presque linéaire (≈ 5 à 6 mg/jour) jusqu'à un maximum ≈ 250 mg vers 55 jours, puis légère baisse.
- Trois phases : (1) 0–10/15 j : divisions et histodifférenciation (embryon, albumen), beaucoup d'eau, peu de matière sèche ; (2) ≈ 15–55 j : remplissage, accumulation des réserves ; (3) au-delà : maturation-dessiccation, la masse sèche est maximale (maturité physiologique) et la graine se déshydrate avant d'entrer en vie ralentie.
10. Rôles de l'ABA et des protéines LEA (doc. 7 et 8)
- Doc. 7A : une protéine LEA (bande ≈ 31 kD) est présente dans les embryons à 25, 31 et 60 DAP ; des embryons prélevés à 25 DAP et cultivés 5 jours sans hormone (GM) n'en ont pas, alors qu'en présence d'ABA elle est abondante : l'ABA induit la synthèse des LEA.
- Doc. 7B : l'ABA augmente fortement entre 20 et ≈ 28 DAP (pic ≈ 1400 ng/g), puis redescend (≈ 500 à 31 DAP, ≈ 300 à 60 DAP).
- Doc. 8 : la tolérance à la dessiccation est nulle jusqu'à 24 DAP, puis passe à 90 % à 28 DAP et 100 % dès 31 DAP, alors que la teneur en eau commence à baisser.
- Interprétation : le pic d'ABA précède/accompagne l'acquisition de la tolérance ; l'ABA déclenche l'expression des protéines LEA, protéines très hydrophiles qui protègent les membranes et les protéines lors de la déshydratation (rétention d'eau, stabilisation, rôle de « chaperons »). L'ABA contrôle aussi l'arrêt de la germination précoce (dormance) pendant la maturation.
11. Mutants vp1 et vp5 (doc. 9)
vp5 (déficient en ABA) : pas de LEA à 25, 31 DAP ni en GM, mais LEA présentes si on apporte de l'ABA : le défaut est réparé par l'hormone. vp1 (insensible à l'ABA) : aucune LEA, même avec ABA : la voie de réponse à l'ABA (VP1) est nécessaire. Dans les deux cas, pas de LEA et pas de tolérance. Ces résultats confirment la chaîne : ABA → perception/réponse (VP1) → expression des LEA → tolérance à la dessiccation.
12. Interprétation des doc. 10 et 11
- Glucose : diminue de ≈ 0,5 (12 j) à ≈ 0,1 (25–35 j). Saccharose : élevé (≈ 0,6–0,7) entre 12 et ≈ 28 j, puis chute vers ≈ 0,05 à 40 j. Amidon : augmente fortement de ≈ 10 à 25 j (0 → ≈ 3,8), puis atteint un plateau (≈ 4–4,7) : il devient la réserve principale de l'albumen.
- ADPG pyrophosphorylase : activité croissante à partir de ≈ 12 j, maximale (≈ 150 nmol/min/graine) vers 27 j, puis décroissante. ADPG amidon synthase : activité croissante à partir de ≈ 15 j, maximale (≈ 10,5) vers 33 j, puis décroissante.
- Interprétation : le saccharose, importé de la plante mère par le phloème, est hydrolysé en hexoses ; le glucose-1-phosphate est activé par l'ADPG pyrophosphorylase (G1P + ATP → ADP-glucose + PPi), puis l'amidon synthase ajoute le glucose de l'ADP-glucose aux chaînes d'amidon (ADPG + (glucose)n → (glucose)n+1 + ADP). La période de forte activité de ces enzymes coïncide avec la période d'accumulation rapide de l'amidon et de consommation des sucres solubles ; leur déclin correspond à la fin du remplissage.
13. Conclusion
Le développement de la semence comprend : (1) l'embryogenèse, où la mise en place des axes et des organes (cotylédons, méristèmes, tissus conducteurs) dépend du transport polarisé de l'auxine (PIN1, GNOM) et de gènes de réponse (MONOPTEROS) ; (2) le remplissage, accumulation de réserves (amidon de l'albumen) à partir du saccharose importé, sous contrôle enzymatique ; (3) la maturation, contrôlée par l'ABA, avec synthèse de protéines LEA, acquisition de la tolérance à la dessiccation et déshydratation. La graine devient une structure en vie ralentie, résistante, capable de dissémination et de germination ultérieure.
أسئلة شائعة حول هذا النموذج
هل يمكن تحميل هذا النموذج مجاناً؟
هل يتضمن هذا النموذج التصحيح؟
ما هي الجهة المنظمة والدرجة المعنية بهذا النموذج؟
ما هي دورة هذا الامتحان ولغة أسئلته؟
أين أجد نماذج أخرى لنفس المباراة؟
💬 ناقش هذا النموذج (0)
شارك إجاباتك أو صحّح التصحيح — إذا كان لديك رأي مختلف حول أي نقطة، اكتبه هنا ليستفيد باقي المترشحين.
لا يوجد نقاش بعد — شارك إجابتك أو سؤالك حول هذا النموذج.
⚠️ ممنوع نشر أرقام الهاتف أو الروابط أو أي عرض مقابل مال — تُحذف هذه المشاركات تلقائياً.
هل تحضّر لهذه المباراة؟
نماذج مشابهة قد تهمّك
المصدر: المواقع الرسمية للمؤسسات (نسخ أرشيفية من Wayback Machine)
